Quand Léa s’écorche le genou, sa peau rougit autour de la plaie. Quelques mois plus tard, elle mange un yaourt sans que ses défenses ne se mobilisent contre ses protéines ou ses ferments. Dans le premier cas, une barrière a été rompue et des cellules abîmées ont donné l’alerte. Dans le second, des substances venues de l’extérieur traversent un tube digestif qui en voit passer tous les jours. Si le système immunitaire attaquait tout ce qui lui était étranger, le moindre repas deviendrait une épreuve.
La distinction entre le soi et le non-soi ne tient donc pas à un signe unique, comparable à un badge que porteraient les cellules. Elle repose sur plusieurs vérifications : les défenses repèrent des motifs microbiens, examinent des fragments de protéines et tiennent compte de l’état du tissu où elles les rencontrent. Certaines cellules spécialisées apprennent à ne pas réagir contre l’organisme ; d’autres freinent une réponse qui risquerait d’abîmer un organe. Ce dispositif explique un paradoxe apparent : une bactérie peut être tolérée dans l’intestin tandis qu’une cellule du corps, si elle est infectée, peut devenir la cible d’une réponse immunitaire.
Comment l’immunité innée repère les microbes et les lésions
Les récepteurs immunitaires reconnaissent des motifs plutôt que des espèces
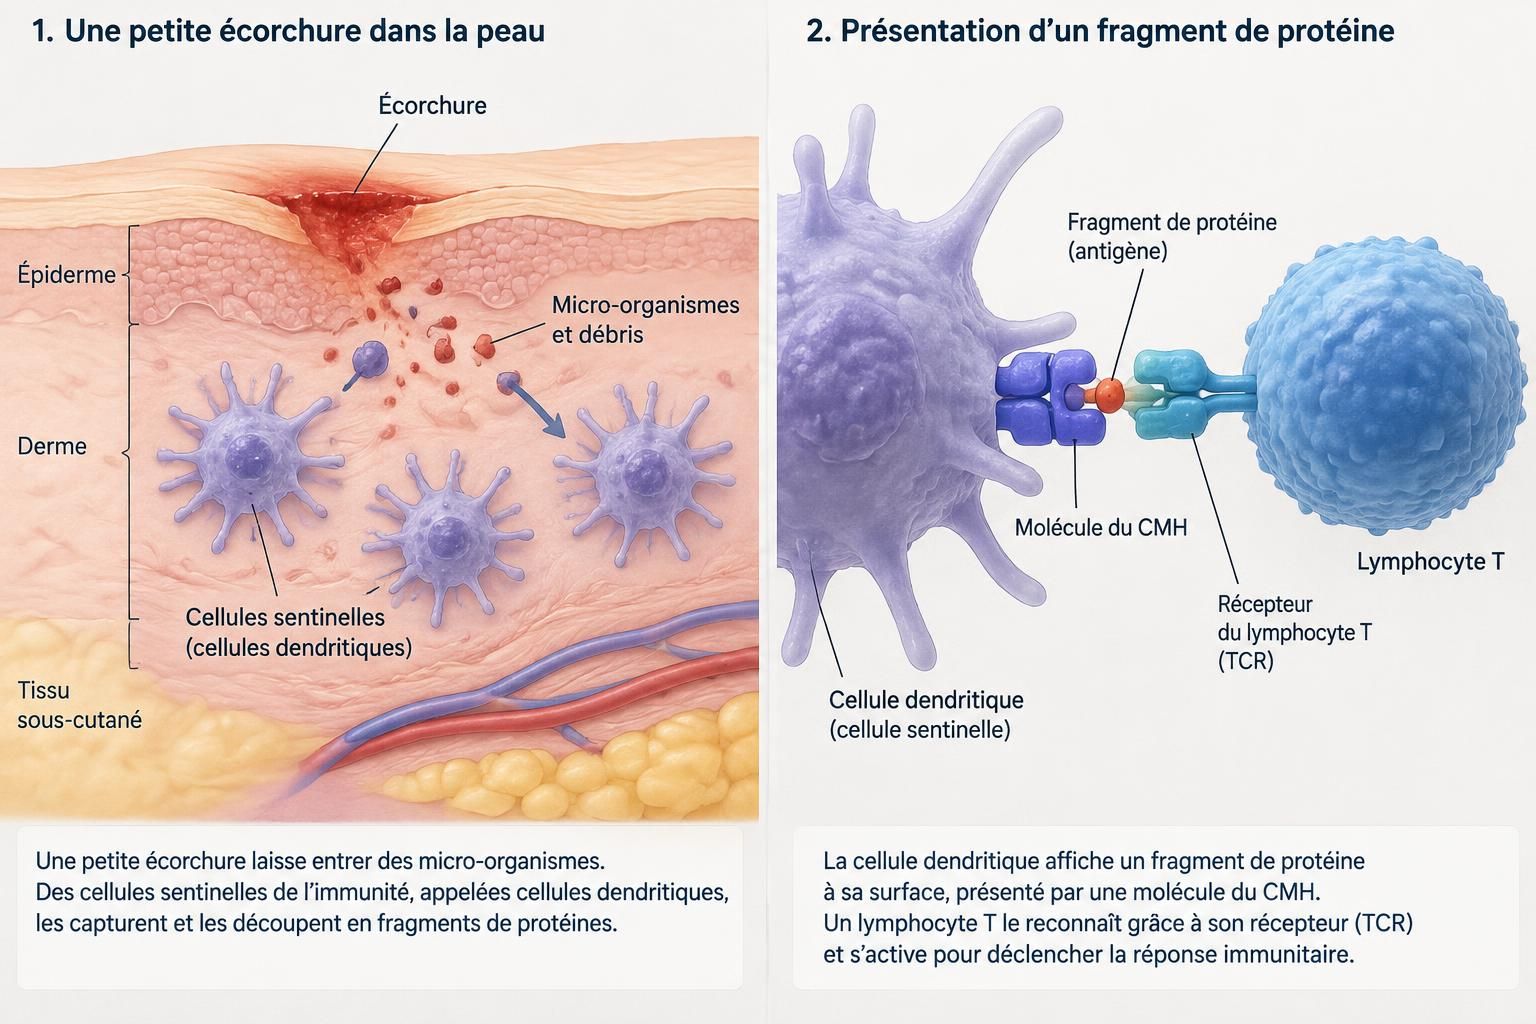
Autour de l’écorchure de Léa, les premiers signaux apparaissent avant même qu’une réponse ciblée contre un microbe puisse se mettre en place. Des cellules de la peau endommagées libèrent des molécules normalement confinées à l’intérieur, tandis que des sentinelles présentes dans le tissu détectent ce qui se passe. La rougeur résulte notamment d’une augmentation locale du débit sanguin ; à elle seule, elle ne prouve pas que la plaie est infectée.
Les cellules de l’immunité innée possèdent des récepteurs immunitaires capables de reconnaître des structures communes à de grandes familles de microbes. Certains détectent des éléments de parois bactériennes, d’autres des motifs caractéristiques de champignons. Une sentinelle n’a donc pas besoin de déterminer le nom d’une espèce pour lancer une première réponse, de la même façon qu’un détecteur de fumée n’a pas besoin de savoir ce qui brûle.
Ces détecteurs ne sont pas tous placés au même endroit. Certains se trouvent à la surface des cellules, d’autres à l’intérieur de compartiments où arrivent des éléments qui ont été absorbés. Cette disposition donne du sens à ce qui est repéré : une molécule retrouvée là où elle ne devrait pas être peut fournir un indice supplémentaire, même si sa simple présence n’aurait pas suffi à déclencher une alerte.
Pourquoi le lieu de la rencontre change la réponse
Dans l’intestin, une couche de mucus et un épithélium intact contribuent à maintenir les bactéries à distance des tissus profonds. Derrière cette barrière, les défenses restent capables de réagir si des microbes la franchissent. Un constituant bactérien rencontré à proximité de la surface digestive n’a donc pas la même portée que le même constituant repéré dans un tissu où il n’a normalement rien à faire.
Le contexte importe également en l’absence de microbe. Après une entorse, par exemple, les lésions suffisent à provoquer une inflammation stérile : la cheville gonfle et devient sensible alors qu’aucun agent infectieux n’est nécessaire pour expliquer ces symptômes. La réponse précoce sert aussi à éliminer des débris et à préparer la réparation, pas seulement à combattre un intrus.
- Un motif microbien indique la présence d’un constituant associé à certains microbes, sans établir à lui seul qu’ils envahissent le tissu.
- Un signal de lésion renseigne sur l’état des cellules locales et peut mobiliser les défenses même après un traumatisme sans infection.
- Le franchissement d’une barrière modifie la signification du signal en plaçant un élément dans un compartiment où il n’est pas attendu.
Ces indices ont des effets concrets. Des sentinelles comme les macrophages peuvent engloutir des débris ou des microbes et libérer des messages chimiques qui attirent d’autres cellules, notamment les neutrophiles. Lorsque cette mobilisation reste locale et s’arrête au bon moment, elle aide à protéger puis à réparer le tissu ; lorsqu’elle se prolonge, elle peut elle-même contribuer aux dégâts.
Les défenses innées sont donc rapides parce qu’elles repèrent des situations-types plutôt que chaque agent séparément. Pour reconnaître une cible avec davantage de précision, il faut passer à une autre échelle : celle des fragments moléculaires que les cellules exposent à leur surface.
Comment le complexe majeur d’histocompatibilité présente les antigènes
Le CMH de classe I expose un échantillon des protéines cellulaires
Une cellule de la peau ne peut pas montrer directement à un lymphocyte T tout ce qui se passe en son intérieur. Elle expose à sa surface de petits fragments de protéines, appelés peptides, fixés à des molécules du complexe majeur d’histocompatibilité, ou CMH. Chez l’être humain, ces molécules sont désignées par le sigle HLA, également utilisé dans le domaine des greffes.
Le CMH de classe I est présent sur la plupart des cellules nucléées. Il expose principalement des peptides issus de protéines présentes à l’intérieur de la cellule, y compris lorsqu’elle est parfaitement saine. Lors d’une infection, des fragments issus de l’agent infectieux peuvent rejoindre cet échantillon et être reconnus par un lymphocyte T CD8 dont le récepteur est adapté à l’association du fragment et de la molécule qui le porte.
Ce système permet de comprendre pourquoi une cellule infectée peut être visée alors qu’elle appartient toujours à l’organisme. Elle n’est pas devenue étrangère : c’est le contenu qu’elle expose qui a changé. Une fois activés, certains T CD8 peuvent provoquer la mort de cellules présentant la cible adéquate, ce qui contribue à limiter l’infection.
Le CMH de classe II informe les cellules qui coordonnent la réponse
Le CMH de classe II est surtout exprimé par des cellules spécialisées, notamment les cellules dendritiques, les macrophages et les lymphocytes B. Il permet généralement de présenter des fragments de protéines captées puis découpées dans des compartiments internes. Les T CD4 qui reconnaissent ces fragments peuvent ensuite aider d’autres cellules, par exemple en soutenant la production d’anticorps ou en renforçant l’activité de certains macrophages.
| Classe de CMH | Cellules qui l’expriment habituellement | Origine habituelle des peptides | Cellules T concernées |
|---|---|---|---|
| Classe I | La plupart des cellules nucléées | Protéines présentes à l’intérieur de la cellule | T CD8 |
| Classe II | Principalement les cellules spécialisées dans la présentation | Protéines captées puis découpées dans la cellule | T CD4 |
Le tableau décrit les trajets les plus courants, mais ne sépare pas les deux classes de façon absolue. Certaines cellules dendritiques peuvent faire de la présentation croisée : elles captent des protéines de l’extérieur et en exposent des fragments par la classe I. Elles peuvent ainsi amorcer une réponse de T CD8 contre une cible qu’elles ont échantillonnée sans être elles-mêmes infectées.
Dans le cas de Léa, une cellule dendritique qui a recueilli du matériel près de la plaie peut rejoindre un ganglion drainant cette région. Elle y expose les fragments à des cellules T qui circulent à la recherche de leur cible. Le ganglion rapproche ainsi deux éléments qui ont peu de chances de se rencontrer par hasard dans la peau : un fragment particulier et la cellule dotée du bon récepteur.
Cette présentation antigénique est une mise à disposition d’informations, pas un ordre d’attaque. Des peptides de l’organisme sont affichés toute la journée sans être pris pour des menaces. Pour comprendre pourquoi l’un déclenche une réponse et l’autre non, il faut examiner à la fois le récepteur qui reconnaît le fragment et les signaux qui accompagnent cette rencontre.
Comment les lymphocytes et les anticorps ciblent les antigènes
Les cellules B et T ne lisent pas leur cible de la même façon
Le mot antigènes désigne des éléments que des récepteurs de l’immunité adaptative ou des anticorps peuvent reconnaître. Il ne dit pas si ces éléments sont dangereux : une protéine alimentaire, une molécule portée par une bactérie et une protéine humaine peuvent chacune être reconnues. La partie précise qui entre en contact avec le récepteur porte un nom : l’épitope.
Pour les cellules T qui reconnaissent des peptides, la cible correspond à l’ensemble formé par le fragment et la molécule qui le présente. Une cellule B, en revanche, peut se lier directement à une structure accessible, par exemple à une forme située à la surface d’un microbe. Autrement dit, l’une examine un échantillon préparé par une cellule ; l’autre peut reconnaître un détail de l’objet intact.
Cette précision ne suppose pas que l’organisme ait déjà rencontré chaque microbe. Au cours de leur développement, les lymphocytes assemblent les segments génétiques qui codent leurs récepteurs, ce qui engendre un répertoire très varié. Lorsqu’une cible apparaît, elle ne dicte pas la fabrication d’un nouveau modèle de récepteur : elle sélectionne, parmi les cellules déjà présentes, celles qui possèdent un modèle capable de la reconnaître.
De la reconnaissance à l’activation : les signaux qui font la différence
Pour une cellule T qui n’a jamais été activée, reconnaître sa cible ne suffit généralement pas. Une cellule dendritique doit aussi fournir un signal de costimulation, qui renseigne sur son propre état d’activation, tandis que des messagers chimiques contribuent à orienter la réponse. Sans cet appui, la rencontre peut laisser la cellule inactive ou la rendre moins réactive, au lieu de provoquer sa multiplication.
Ce principe éclaire le fonctionnement d’un vaccin sans assimiler la vaccination à une infection. Après une vaccination, comme celle de Léa lors d’un rendez-vous de routine, les défenses rencontrent une cible dans des conditions qui favorisent l’apprentissage immunitaire. Avec certains vaccins, un adjuvant renforce les signaux de l’immunité innée qui soutiennent cet apprentissage.
Pour de nombreuses cibles protéiques, les cellules B reçoivent ensuite l’aide de T CD4 spécialisés. Certaines de leurs descendantes deviennent des plasmocytes qui sécrètent des anticorps, tandis que d’autres persistent sous forme de cellules mémoire. L’intérêt de cette coopération est double : produire des molécules utiles au moment de la rencontre et permettre une réaction plus rapide lors d’une exposition ultérieure.
Les molécules sécrétées n’agissent pas toutes de la même manière. Certaines neutralisent une toxine en l’empêchant de se fixer à sa cible ; d’autres recouvrent un microbe et facilitent son ingestion par des cellules chargées de l’éliminer. Se lier à un élément ne signifie donc pas nécessairement le détruire directement : cette liaison peut surtout changer ce que l’élément est capable de faire ou la facilité avec laquelle il est éliminé.
La mémoire explique pourquoi une rencontre passée modifie la réponse à une rencontre future, mais elle ne règle pas un problème posé dès le départ par la diversité des récepteurs. Si certains reconnaissent avec force des protéines de Léa elle-même, comment éviter qu’ils ne lancent leur propre campagne contre ses tissus ? C’est le rôle de la tolérance, qui intervient avant et après la mise en circulation de ces cellules.
Comment la tolérance immunitaire protège les cellules du soi
Dans le thymus et la moelle osseuse, un premier tri du répertoire
Produire une grande variété de récepteurs donne au système immunitaire la possibilité d’identifier des inconnus, mais crée aussi un risque : certaines combinaisons reconnaissent des constituants humains. La tolérance immunitaire regroupe les mécanismes qui empêchent cette reconnaissance de se transformer en agression contre l’organisme. Une partie de ce travail se fait dans les organes où les cellules immunitaires se développent.
Dans le thymus, les jeunes cellules T passent d’abord une sélection dite positive. Pour survivre à cette étape, leur récepteur doit pouvoir interagir suffisamment avec les molécules de CMH de l’organisme qui leur présentent des peptides. Ce filtre ne sert pas à les rendre agressives : il vérifie qu’elles sauront lire le mode de présentation qu’elles rencontreront ensuite dans les tissus.
La sélection négative écarte ensuite une grande partie des cellules qui réagissent trop fortement à des fragments du corps. Le thymus peut exposer des peptides issus de protéines normalement associées à des organes éloignés, ce qui élargit le contrôle bien au-delà de ses propres constituants. Certaines cellules, au lieu d’être éliminées, se différencient en T régulateurs et participent plus tard au maintien de la tolérance.
Dans la moelle osseuse, les cellules B immatures sont soumises à un autre type de contrôle. Quand leur récepteur se lie fortement à certaines structures de l’organisme, elles peuvent notamment remanier une partie de ce récepteur, ce qui change sa cible. Selon la situation, une cellule qui reste autoréactive peut être éliminée ou rendue peu réactive.
Dans les tissus, des freins évitent de réagir à tout ce qui est reconnu
Le premier filtre ne couvre pas toutes les rencontres possibles. Des cellules capables de reconnaître le soi circulent aussi chez des personnes en bonne santé ; leur présence ne suffit pas à établir une maladie. Dans les tissus et les ganglions, l’absence de signaux activateurs, les messages inhibiteurs et l’action des T régulateurs contribuent à empêcher une réponse dommageable.
Le yaourt de Léa illustre un autre aspect de cet apprentissage : la tolérance ne protège pas seulement des constituants humains. Une partie des protéines alimentaires est dégradée pendant la digestion, mais le système immunitaire intestinal rencontre aussi des fragments de ces protéines. En l’absence d’un contexte inflammatoire marqué, les interactions locales peuvent favoriser une réponse régulatrice plutôt que la mobilisation de cellules capables de léser la muqueuse.
Cette cohabitation n’implique pas que l’intestin renonce à se défendre. Les IgA sécrétoires, des anticorps présents sur les muqueuses, peuvent se lier à des microbes dans la lumière intestinale et contribuer à limiter leur contact avec l’épithélium. L’organisme peut ainsi maintenir une distance avec des habitants ordinaires sans déclencher à chaque rencontre une inflammation comparable à celle d’un tissu envahi.
La différence entre la plaie et le repas ne tient donc pas au fait que l’organisme ignore l’un et remarque l’autre. Dans les deux cas, il reçoit des informations ; ce sont la nature et le lieu des signaux, ainsi que les freins actifs à ce moment-là, qui changent l’issue. Les allergies, les maladies auto-immunes et les greffes rendent ces arbitrages particulièrement visibles.
Auto-immunité, allergies et greffes : quand la discrimination immunitaire se complique
Auto-immunité et allergie : deux cibles, deux erreurs de réponse
Quelques semaines après son écorchure, Léa accompagne un proche à une consultation pour des douleurs et un gonflement des articulations. Ces symptômes ne suffisent pas à identifier leur cause, mais ils permettent de poser une question : si une inflammation a aidé à réparer son genou, pourquoi peut-elle aussi abîmer une articulation ? La réponse dépend de ce qui l’entretient et de la cible vers laquelle les défenses se dirigent.
Dans une maladie auto-immune, la réponse vise des constituants de l’organisme et participe aux lésions. Dans le diabète de type 1, par exemple, des mécanismes immunitaires s’attaquent aux cellules bêta du pancréas, qui produisent l’insuline. L’enjeu n’est pas une activité excessive partout : c’est la perte de tolérance envers certaines cibles, dont l’atteinte a ici un effet direct sur la régulation de la glycémie.
Dans une allergie, la cible est extérieure, mais la réponse est disproportionnée par rapport au danger qu’elle représente. Dans certaines allergies au pollen, des IgE se fixent sur des cellules appelées mastocytes. Lors d’une nouvelle exposition, l’allergène peut déclencher la libération d’histamine et d’autres médiateurs, ce qui explique des symptômes comme les démangeaisons ou l’écoulement nasal sans qu’un microbe soit en train d’envahir le nez.
Cette comparaison aide à ne pas confondre trois situations qui peuvent paraître identiques au premier regard. Une rougeur autour d’une plaie peut provenir des lésions locales ; une allergie répond à une substance étrangère habituellement sans danger ; une affection auto-immune vise des structures humaines. L’inflammation, visible dans chacun de ces cas, renseigne sur l’activité des défenses mais ne révèle pas, à elle seule, ce qu’elles ont reconnu.
Pourquoi un organe sain peut être rejeté après une greffe
Un rein greffé peut être sain et fonctionnel tout en portant des molécules HLA différentes de celles du receveur. Pour les défenses de ce dernier, ces différences rendent le greffon reconnaissable comme du non-soi, sans qu’aucune infection soit nécessaire. Des cellules T peuvent participer au rejet, tout comme des anticorps dirigés contre des structures du donneur.
Les équipes médicales évaluent la compatibilité et recherchent notamment des anticorps déjà présents qui pourraient réagir contre le greffon. Le poids des différents critères varie selon l’organe et la situation clinique ; une bonne compatibilité ne rend pas systématiquement le traitement antirejet superflu. Ce traitement vise à protéger l’organe transplanté, mais il peut aussi réduire certaines défenses utiles, d’où l’importance d’un suivi régulier.
Le contraste avec l’intestin est révélateur. Des bactéries génétiquement très éloignées de l’être humain peuvent être tolérées tant qu’elles occupent leur place habituelle, tandis qu’un organe venant d’une autre personne peut provoquer une réaction durable. La discrimination immunitaire ne mesure donc pas seulement la ressemblance avec le corps : elle dépend de ce qui est montré aux défenses, de l’endroit où la rencontre se produit et des signaux qui laissent la réponse démarrer ou l’arrêtent.
Questions fréquentes sur la reconnaissance du soi et du non-soi
Une cellule humaine présente-t-elle des fragments même lorsqu’elle est saine ?
Oui. La plupart des cellules nucléées présentent en permanence des fragments de leurs protéines via le CMH de classe I. Cet affichage est normal et ne déclenche pas automatiquement une attaque.
Un antigène est-il forcément dangereux ?
Non. Un antigène est une cible reconnue par les défenses adaptatives. Il peut appartenir à un microbe, à un aliment, à un pollen ou à l’organisme lui-même. La nature de la cible et le contexte de sa rencontre influencent la réponse.
Pourquoi les bactéries du microbiote ne sont-elles pas toutes éliminées ?
La barrière intestinale et le mucus limitent leur contact avec les tissus, tandis que les IgA et les mécanismes de régulation favorisent la cohabitation. Si des bactéries franchissent cette barrière, elles peuvent déclencher une réponse différente.
Quelle différence y a-t-il entre une maladie auto-immune et un rejet de greffe ?
Dans une maladie auto-immune, la réponse vise des constituants de l’organisme. Lors d’un rejet, les défenses du receveur réagissent contre des éléments de l’organe provenant du donneur, notamment en raison de différences entre leurs molécules HLA.