Pourquoi les feuilles du mimosa pudique se replient-elles au toucher ?
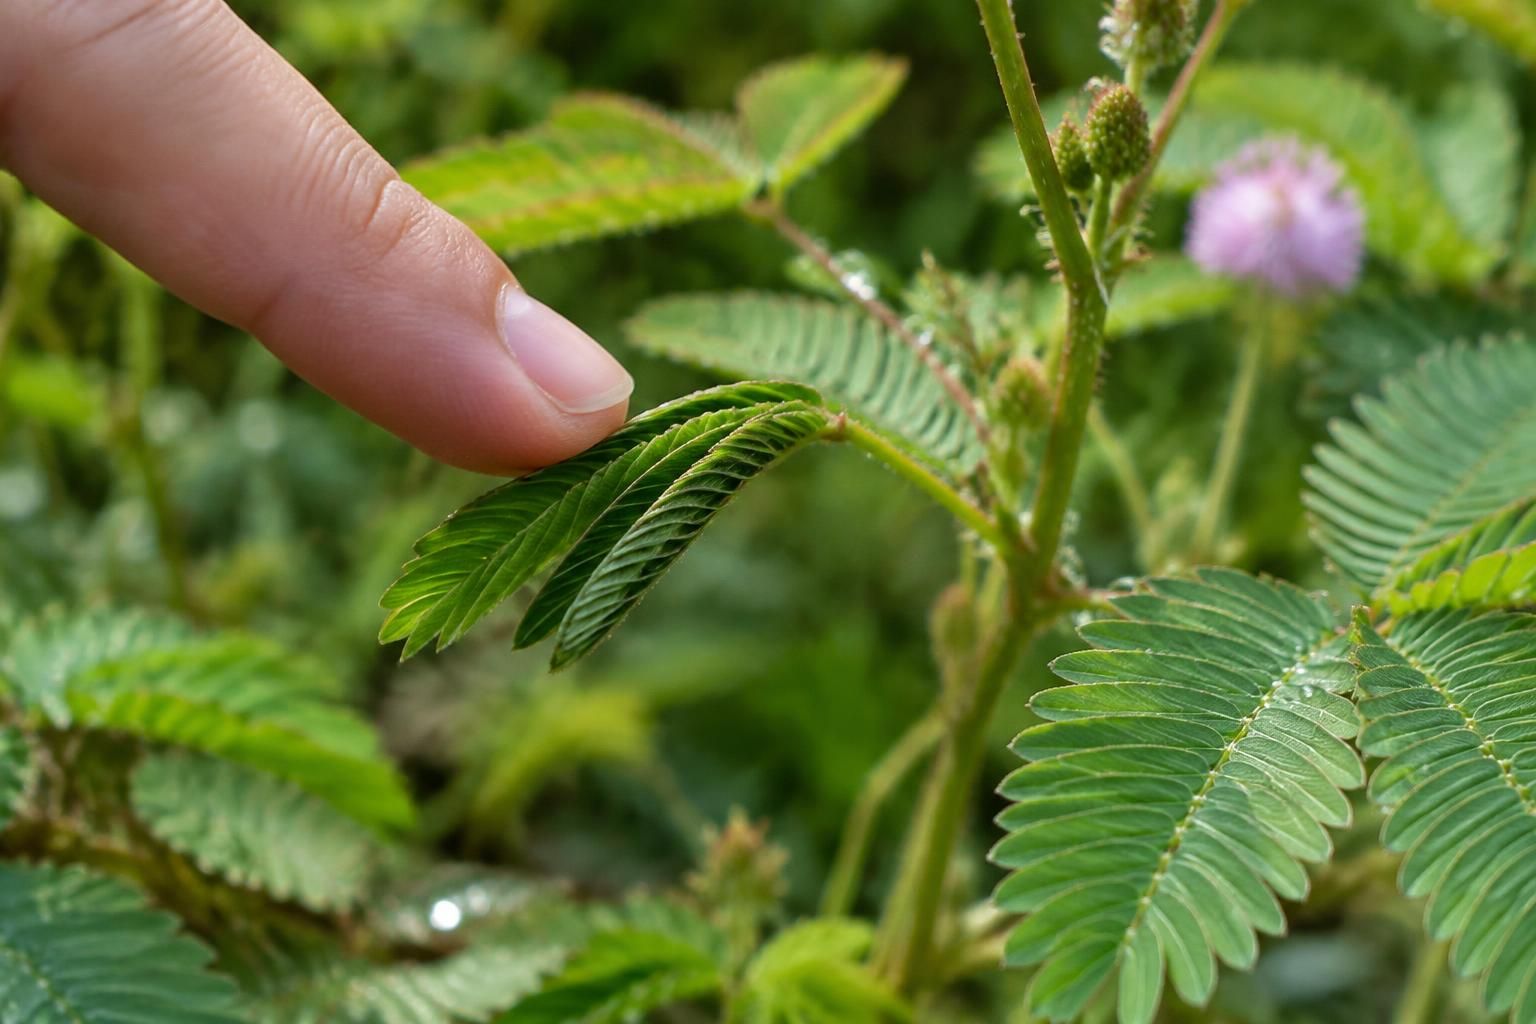
Un doigt effleure une foliole, puis plusieurs petites lames vertes se rapprochent les unes des autres. Chez le mimosa pudique, nommé Mimosa pudica en botanique, ce changement peut se produire en quelques secondes, parfois accompagné d’un abaissement du pétiole qui porte la feuille entière.
Cette réaction au toucher repose sur un mécanisme biologique précis : la déformation d’un tissu déclenche un signal, puis des cellules spécialisées modifient leur teneur en eau. La plante change ainsi de posture sans muscle, sans articulation comparable à celle d’un animal et sans intervention d’un cerveau.
La thigmonastie : un mouvement déclenché par le contact
Le terme thigmonastie désigne un mouvement végétal provoqué par une stimulation tactile, dont la direction dépend de l’organisation de l’organe plutôt que de l’endroit d’où vient le contact. Que l’on effleure une foliole par-dessus ou sur le côté, son repli suit une trajectoire déterminée par sa structure.
On rencontre également le mot « séismonastie », notamment lorsque la réponse est déclenchée par une secousse ou une vibration. Ces termes décrivent des stimulations proches : dans les deux cas, une perturbation physique est convertie en une modification rapide de la position du feuillage.
Clara, qui cultive une sensitive près d’une fenêtre, remarque que toutes les feuilles ne se ferment pas systématiquement ensemble. Un effleurement local peut entraîner une réponse limitée, tandis qu’une sollicitation plus forte peut provoquer une réaction plus étendue.
Cette différence montre que le végétal ne fonctionne pas comme un interrupteur unique. L’intensité du stimulus, son emplacement, l’état hydrique et les conditions ambiantes influencent la réponse visible, tout comme les sollicitations déjà subies par le même organe.
Une feuille composée, plusieurs niveaux de repli
Ce que l’on prend spontanément pour une petite feuille est souvent une foliole, c’est-à-dire une subdivision d’une feuille composée. Chez la sensitive, ces éléments sont disposés de part et d’autre de petits axes, eux-mêmes rattachés à une structure plus grande.
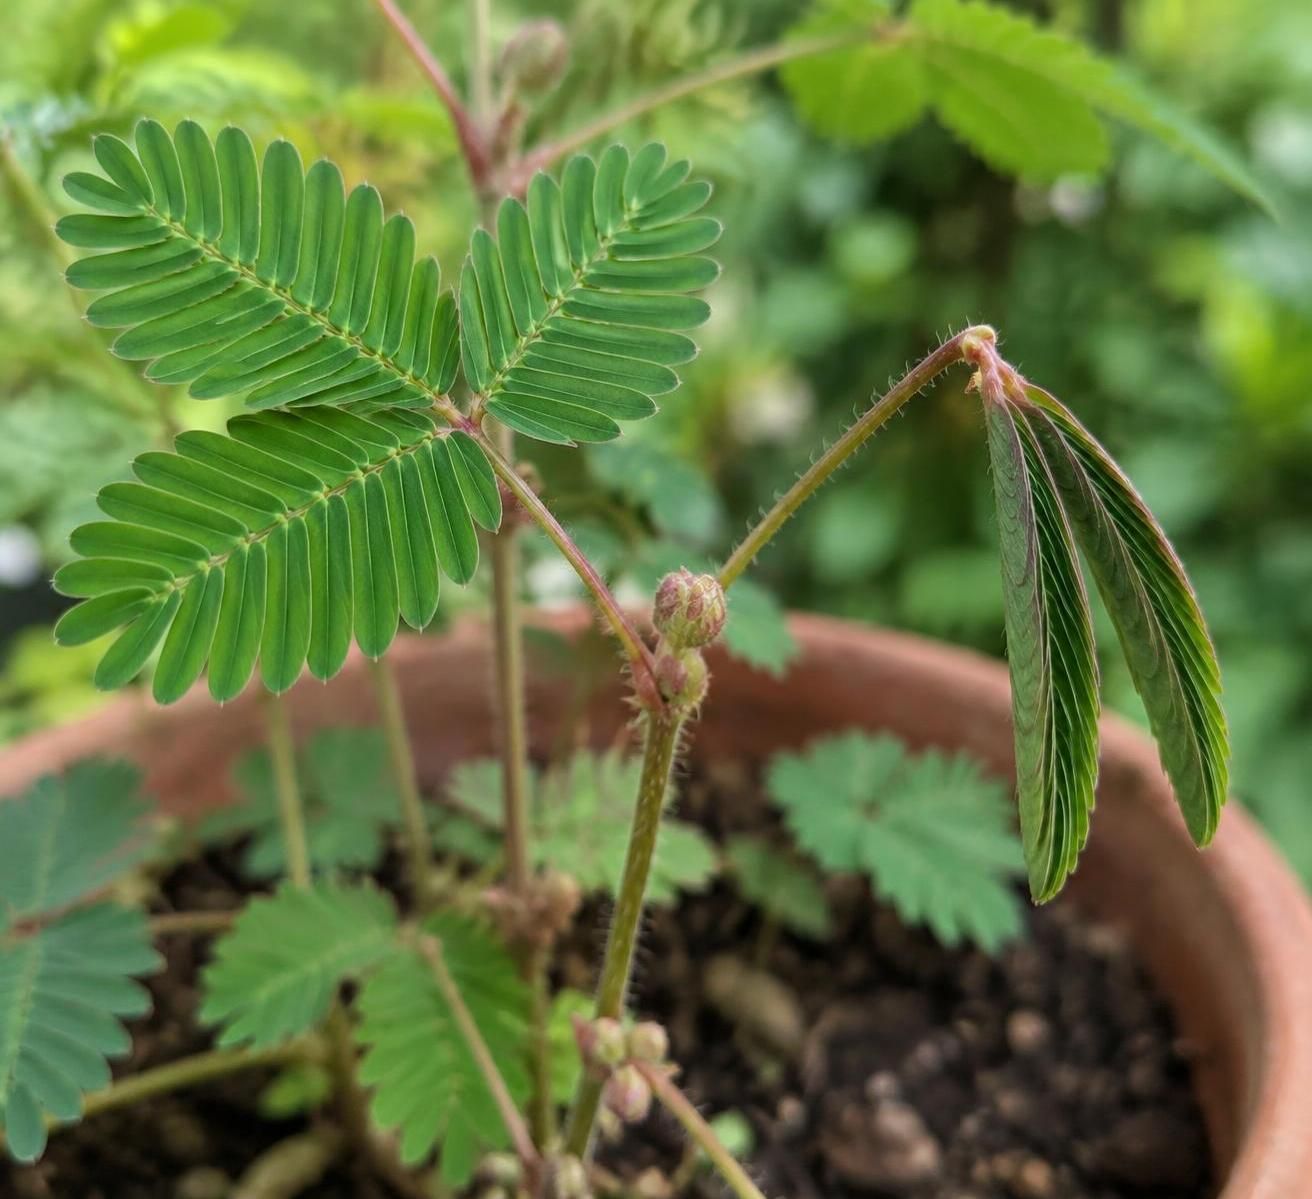
Cette architecture explique l’impression de fermeture progressive. Les folioles peuvent se rapprocher par paires, les axes secondaires changer de position et le pétiole s’abaisser : plusieurs mouvements coordonnés transforment alors rapidement la silhouette de la plante.
Il ne s’agit pas d’un flétrissement accidentel provoqué par une blessure. Dans de bonnes conditions, les organes retrouvent leur position initiale après une période de récupération, généralement à l’échelle de plusieurs minutes, avec des variations selon la température, l’éclairage et l’état du sujet.
Les plantes sensibles ne ressentent pas le contact comme un animal
L’expression plantes sensibles décrit leur capacité à détecter des changements et à y répondre. Elle ne signifie pas qu’elles possèdent une sensibilité consciente comparable à celle d’un humain ou d’un insecte.
Le vocabulaire courant entretient parfois une confusion : une sensitive ne devient pas « timide » et ne décide pas de se cacher. Son surnom traduit simplement l’effet spectaculaire de son comportement sur l’observateur, qui reconnaît spontanément une attitude familière dans ce mouvement.
La distinction est importante pour comprendre le phénomène sans lui enlever son intérêt. Détecter une déformation, transmettre une information et produire une réponse adaptée constituent déjà des capacités remarquables, même en l’absence de système nerveux.
Le détail décisif se trouve donc moins dans une mystérieuse volonté de la feuille que dans son anatomie : une organisation spécialisée transforme un contact minuscule en déplacement visible.
Comment le pulvinus transforme-t-il le toucher en mouvement des feuilles ?
À la base du pétiole et de certaines ramifications foliaires, la sensitive possède de petits renflements appelés pulvini, au singulier pulvinus. Ces structures jouent le rôle d’organes moteurs : leur fonctionnement repose sur des variations de turgescence, autrement dit de pression exercée par le contenu cellulaire sur les parois.
Pour comprendre le mouvement des feuilles, on peut imaginer deux ensembles de cellules qui ne conservent plus exactement le même volume. Lorsqu’un côté devient moins turgescent que l’autre, l’équilibre mécanique change et l’organe se courbe dans une direction déterminée.
Du contact mécanique au signal électrique
Une stimulation mécanique déforme localement les tissus et sollicite les membranes cellulaires. Des protéines sensibles à ces contraintes participent à la conversion de cette déformation en changements électriques et chimiques, notamment par des mouvements d’ions.
Le calcium intervient dans cette signalisation, avec d’autres acteurs cellulaires. Des variations du potentiel électrique des membranes peuvent ensuite se propager dans les tissus et contribuer à déclencher la réponse des zones motrices situées à distance du point touché.
Il existe donc bien des signaux électriques chez les végétaux. Toutefois, les assimiler à des influx circulant dans des nerfs serait trompeur : les plantes ne possèdent ni neurones ni réseau nerveux animal, et leur signalisation suit leur propre organisation biologique.
Clara le constate lorsqu’une foliole effleurée est suivie du repli de ses voisines. Son doigt n’a pas touché chaque élément séparément : une information a circulé à travers les tissus, permettant une réponse coordonnée au-delà de la zone directement sollicitée.
Pourquoi l’eau fait varier la pression cellulaire
Dans les cellules motrices, des ions, notamment le potassium et le chlorure, sont redistribués entre différents compartiments. Ces déplacements modifient les gradients osmotiques, qui influencent à leur tour la circulation de l’eau à travers les membranes.
Lorsque certaines cellules perdent rapidement de l’eau, leur pression cellulaire diminue. Le contraste avec les tissus voisins provoque une déformation du renflement moteur et entraîne le déplacement de l’organe qu’il soutient.
L’eau n’est donc pas simplement un carburant consommé pendant la fermeture. Elle constitue un élément mécanique du dispositif : son changement de répartition transforme les propriétés physiques des tissus et permet une action rapide sans raccourcissement musculaire.
Les parois cellulaires, leur disposition et les caractéristiques des membranes participent également au résultat. Le mouvement n’est pas produit par un simple gonflement uniforme, mais par une organisation asymétrique capable de convertir des changements microscopiques en basculement visible.
La réouverture demande une remise à l’équilibre
Une fois la sollicitation passée, les cellules doivent rétablir leurs gradients ioniques et leur état hydrique. Cette récupération mobilise des mécanismes de transport, dont certains nécessitent de l’énergie fournie par le métabolisme.
C’est pourquoi le retour à la position ouverte est généralement plus lent que le repli initial. La vitesse dépend aussi de l’état général du végétal : un sujet déshydraté, refroidi ou déjà fortement sollicité ne présente pas nécessairement la même réponse qu’un individu vigoureux.
Le mécanisme peut être suivi comme une chaîne d’événements : déformation, signalisation, redistribution ionique, déplacement d’eau, changement de posture. Chaque maillon explique une partie du spectacle, sans qu’il soit nécessaire d’attribuer à la plante une intention de bouger.
Le repli des feuilles est-il une défense végétale contre les dangers ?
Le fonctionnement de la fermeture est bien décrit, mais son intérêt écologique exige de distinguer plusieurs situations. Dire que la sensitive se replie « pour se protéger » fournit une première explication utile, à condition de ne pas transformer chaque bénéfice possible en fonction démontrée dans tous les milieux.
Une défense végétale peut agir de nombreuses façons : rendre un tissu difficile à manger, produire des substances dissuasives ou modifier l’accès aux parties tendres. Ici, le changement rapide de silhouette intervient dans les interactions avec les animaux qui approchent ou consomment le feuillage.
Une silhouette moins accessible aux herbivores
Quand les folioles se rapprochent, la surface verte déployée devient moins apparente. L’ensemble peut évoquer un feuillage flétri et présenter une prise différente pour un animal qui cherche à se poser ou à se nourrir.
Le mouvement lui-même peut aussi perturber un petit arthropode, voire contribuer à son décrochage selon sa position. Cet effet dépend de la taille du visiteur, de son comportement et de la partie végétale qu’il occupe : tous les insectes ne réagissent pas de manière identique.
Il serait donc excessif d’affirmer que la fermeture « effraie les insectes » dans leur ensemble. Certains organismes sont herbivores, d’autres prédateurs ou simples visiteurs, et une même modification de posture n’a pas les mêmes conséquences pour chacun.
L’abaissement du feuillage peut également rendre plus visibles des structures moins accueillantes, comme les petits aiguillons présents sur certaines parties de la sensitive. Plusieurs traits de la plante contribuent ainsi à une protection globale, sans que le mouvement constitue à lui seul une barrière infranchissable.
Pluie et vent : une réponse réelle, un bénéfice à distinguer
Des gouttes, des vibrations ou une agitation importante peuvent stimuler les tissus et déclencher une fermeture. Cela montre que le dispositif répond à des contraintes physiques variées, pas uniquement au doigt d’un observateur.
En revanche, déclencher un repli et protéger efficacement contre les intempéries sont deux choses différentes. L’idée d’une réduction des dommages liés à la pluie ou au vent doit être examinée selon les conditions et ne constitue pas une explication universelle du phénomène.
Pour établir un bénéfice, il faut comparer les conséquences concrètes : quantité de tissu endommagé, survie, croissance ou reproduction. Observer une feuille fermée sous une averse ne suffit pas à prouver que cette fermeture améliore sa résistance.
Une protection qui comporte aussi un coût
Une feuille déployée intercepte la lumière et participe à la photosynthèse. Lorsqu’elle reste rabattue, son exposition change, tandis que la restauration des équilibres cellulaires mobilise des ressources : la réponse n’est donc pas gratuite.
Clara comprend alors pourquoi toucher sa sensitive à chaque passage n’est pas anodin. Répéter les fermetures impose une perturbation sans bénéfice protecteur, tout en réduisant temporairement les conditions favorables à la capture de lumière.
L’adaptation des plantes se comprend à travers ce type de compromis. Une réaction avantageuse face à certaines agressions peut devenir coûteuse lorsqu’elle est déclenchée inutilement ou trop souvent, ce qui explique l’intérêt d’une réponse modulée plutôt que permanente.
La bonne question écologique n’est donc pas seulement « pourquoi la feuille bouge-t-elle ? », mais « dans quelles circonstances ce déplacement améliore-t-il réellement ses chances de survie ? ».
Toutes les plantes qui ferment leurs feuilles réagissent-elles au toucher ?
Un feuillage fermé ne révèle pas automatiquement le stimulus qui l’a fait bouger. Des espèces replient leurs folioles à la tombée du jour, d’autres orientent progressivement leurs organes vers une lumière, tandis que certaines modifient leur croissance après des sollicitations répétées.
Ces réponses appartiennent à des catégories différentes, même lorsqu’elles produisent une apparence voisine. Pour les distinguer, il faut regarder le déclencheur, la vitesse, le caractère réversible du phénomène et son éventuelle dépendance à une direction extérieure.
Fermeture nocturne et contact : deux déclencheurs distincts
La nyctinastie correspond aux changements de position associés à l’alternance du jour et de la nuit. Elle se rencontre notamment chez diverses légumineuses et chez des oxalis, dont les folioles adoptent une posture caractéristique lorsque les conditions lumineuses changent.
Une horloge biologique interne intervient dans ces rythmes, en interaction avec les signaux de l’environnement. Il ne suffit donc pas de dire que ces végétaux « dorment » : cette image décrit commodément leur apparence, mais ne correspond pas au sommeil animal.
La sensitive peut présenter à la fois des mouvements nocturnes et une réponse rapide au contact. Les mêmes grandes propriétés hydrauliques des organes moteurs peuvent ainsi participer à des comportements déclenchés dans des contextes différents.
| Phénomène | Déclencheur principal | Manifestation caractéristique | Exemple |
|---|---|---|---|
| Thigmonastie | Contact mécanique | Repli dont la direction dépend de l’anatomie | Mimosa pudica |
| Nyctinastie | Rythme quotidien et variations lumineuses | Changement périodique de posture | Oxalis et diverses légumineuses |
| Thigmotropisme | Contact avec un support | Croissance orientée par le contact | Vrille de pois |
| Thigmomorphogenèse | Contraintes mécaniques répétées | Modification progressive du développement | Tige exposée régulièrement au vent |
La dionée ferme un piège, pas une feuille de sensitive
La dionée attrape-mouche offre un autre exemple spectaculaire de perception mécanique. Le déplacement de poils sensoriels situés à l’intérieur du piège peut déclencher sa fermeture, selon l’enchaînement et la proximité temporelle des stimulations.
La fonction principale est ici la capture de proies, qui permet l’acquisition de nutriments dans des habitats où certains éléments minéraux sont peu disponibles. Le dispositif ne remplit donc pas le même rôle que le rabattement du feuillage d’une sensitive.
Sa mécanique est également différente : les propriétés élastiques des lobes et leur changement de courbure contribuent au claquement. Regrouper ces deux espèces sous l’étiquette de végétaux réactifs est pratique, mais ne doit pas masquer la diversité de leurs structures.
Les vrilles et les tiges répondent parfois beaucoup plus lentement
Une vrille qui rencontre un tuteur peut progressivement s’enrouler autour de lui. Ce phénomène repose notamment sur une croissance différentielle : contrairement au repli rapide d’une foliole, il construit une nouvelle forme orientée par le contact.
Une tige régulièrement agitée par le vent peut, de son côté, modifier ses proportions au cours du développement. Cette thigmomorphogenèse illustre une réponse durable aux contraintes, plutôt qu’un déplacement immédiatement réversible.
En comparant sa sensitive à un pois grimpant, Clara découvre ainsi deux solutions biologiques à une même capacité générale : détecter une interaction physique. La perception du contact est largement répandue ; le repli spectaculaire n’est qu’une de ses expressions.
Comment observer une sensitive sans multiplier les fermetures inutiles ?
Le caractère spectaculaire de la sensitive invite à recommencer l’expérience, surtout lorsque l’on découvre qu’un simple effleurement suffit. Pourtant, une observation espacée apporte davantage d’informations qu’une succession de contacts sur une plante qui n’a pas récupéré.
La qualité de l’expérience dépend aussi des conditions de culture. Un individu récemment déplacé, déshydraté ou exposé au froid ne constitue pas un bon point de comparaison avec un sujet installé dans une ambiance stable et favorable à sa croissance.
Un protocole simple pour observer le repli des folioles
Clara choisit une feuille bien déployée et note l’heure de l’observation, l’éclairage et l’état du terreau. Elle évite de déplacer le pot juste avant l’essai, car les secousses pourraient déjà provoquer une réponse et brouiller ce qu’elle cherche à mesurer.
Son objectif n’est pas d’obtenir la réaction la plus forte, mais de suivre un événement local depuis son déclenchement jusqu’au retour à la position initiale. Une vidéo réalisée avec un téléphone permet ensuite de revoir les étapes sans imposer de nouvelles sollicitations.
- Choisir une plante en bon état, avec un feuillage ouvert et un substrat correctement hydraté.
- Effleurer une seule foliole avec un objet fin et non coupant, sans pincer ni frotter.
- Observer quels éléments se replient : folioles voisines, axes secondaires ou pétiole.
- Noter le délai de fermeture puis celui de la réouverture, sans intervenir entre les deux.
- Laisser une longue période de repos avant toute nouvelle observation.
Cette démarche permet de distinguer ce qui est réellement observé de ce qui est supposé. Par exemple, une propagation visible du repli ne renseigne pas à elle seule sur la vitesse exacte du signal électrique : le déplacement et la transmission ne sont pas la même mesure.
Pourquoi une sensitive sollicitée répond-elle parfois moins ?
Après des stimulations répétées, la réponse peut diminuer ou devenir plus lente. Plusieurs facteurs interviennent, notamment la récupération des gradients ioniques, l’état hydrique des tissus et la disponibilité énergétique ; l’image d’une plante qui « s’essouffle » reste donc une simplification.
Une baisse de réaction ne démontre pas automatiquement un apprentissage. Certaines expériences scientifiques étudient des réponses compatibles avec une habituation, mais leur interprétation exige de distinguer ce phénomène d’une fatigue physiologique ou d’un changement des conditions d’observation.
À la maison, il est inutile de chercher le nombre maximal de fermetures possible dans une journée. Cette valeur ne serait pas universelle et dépendrait de nombreux paramètres ; elle encouragerait surtout à multiplier des sollicitations sans intérêt pour la santé du végétal.
Les conditions de culture qui favorisent un fonctionnement normal
La sensitive apprécie généralement une ambiance chaude et lumineuse, avec une exposition adaptée progressivement pour éviter les brûlures. Le terreau doit rester suffisamment humide, sans eau stagnante durable autour des racines, car hydratation et oxygénation sont toutes deux nécessaires.
Une atmosphère très sèche, un substrat desséché ou un changement brutal d’environnement peuvent affecter son aspect. Avant d’interpréter une absence de fermeture comme un défaut de sensibilité, il faut donc examiner l’ensemble des conditions de culture plutôt que répéter les contacts.
Il faut également distinguer une fermeture normale d’un problème persistant. Des folioles rabattues au moment habituel de la nuit n’ont pas la même signification qu’un feuillage durablement affaissé, jauni ou desséché pendant la journée.
En laissant son sujet tranquille entre deux observations, Clara obtient finalement des résultats plus faciles à comparer. Observer les temps de repos fait pleinement partie de l’expérience : la récupération révèle autant le fonctionnement du végétal que son mouvement spectaculaire.
Toutes les plantes peuvent-elles détecter le toucher ?
La perception des contraintes mécaniques est largement répandue chez les végétaux. En revanche, seules certaines espèces possèdent des structures permettant un mouvement rapide et facilement visible, comme le repli des folioles du mimosa pudique.
La sensitive souffre-t-elle quand on touche ses feuilles ?
Le repli ne démontre ni douleur ni expérience consciente comparable à celle d’un animal. Un effleurement ne blesse normalement pas les tissus, mais des manipulations répétées ou brutales peuvent perturber le fonctionnement de la plante ou l’endommager.
Combien de temps les feuilles restent-elles fermées ?
La réouverture se produit généralement à l’échelle de plusieurs minutes, parfois davantage. Sa durée dépend notamment de l’intensité de la sollicitation, de la température, de l’éclairage, de l’hydratation et des contacts précédents.
Pourquoi mon mimosa pudique se ferme-t-il sans contact ?
Il peut changer de posture avec le cycle jour-nuit, réagir à une vibration, à un déplacement du pot ou à des gouttes d’eau. Un feuillage qui reste anormalement affaissé doit aussi conduire à vérifier l’arrosage et les conditions de culture.
Peut-on toucher une sensitive tous les jours ?
Un contact occasionnel et délicat ne présente généralement pas de difficulté pour un sujet vigoureux. Il vaut toutefois mieux éviter les démonstrations répétées, laisser le feuillage se rouvrir complètement et privilégier l’observation sans manipulation.